


凋亡途径驱动新鲜与老化氧化锌纳米颗粒细胞毒性差异
摘要
氧化锌纳米颗粒(ZnO NPs)广泛应用于工业、商业产品和医药领域。大量机制研究基于原始(新鲜)NPs进行,但老化(转化)ZnO NPs诱导的细胞毒性及其潜在机制尚不清晰。本研究观察ZnO NPs随时间发生的理化转化,评价新鲜和老化NPs细胞毒性。发现新鲜ZnO NPs诱导凋亡水平高于老化NPs。RNA测序显示老化ZnO NP处理人-仓鼠杂交(AL)细胞中p53、PI3k-Akt、FoXO、谷胱甘肽、ErbB、HIF-1、催产素和Jak-STAT信号通路富集,但无凋亡通路。定量PCR显示新鲜NP处理组IL1B和CD69 mRNA水平显著高于老化ZnO NP和氯化锌处理组。结果表明老化ZnO NPs细胞毒性降低部分归因于其诱导凋亡能力减弱。老化NPs激活的多信号通路转录调控可能有助于建立细胞稳态。研究凸显老化(环境转化)过程对ZnO NPs毒性及生物后果的影响。
引言
纳米技术数十年快速发展使纳米颗粒(NPs)应用于工业、人类日常生活和纳米医学等各领域。纳米技术消费品清单(CPI)显示2005-2015年纳米产品数量增加30倍,包括762种健康(健身)产品、72种食品(饮料)和23种婴儿产品。NPs在消费品和各领域应用增加了NPs进入环境可能性,引发对其潜在不利影响的安全担忧。氧化锌(ZnO)NPs是最常用NPs之一,全球年产量近3400吨。先前被认为生物惰性的物质在纳米颗粒态可能变得有毒。越来越多研究阐明ZnO NPs可通过诱导显著毒性对哺乳动物细胞和动物构成重大风险。
包覆、表面官能化、氧化态修饰等策略通过改变NPs理化性质(溶解、团聚、细胞膜扰动等)减弱潜在毒性。虽这些修饰在一定程度上减弱毒性,但NPs使用并非总是安全,特别是特定暴露条件和环境下。实际上多种NPs不稳定,有意或无意释放到自然环境后倾向发生"老化"或"环境转化"。近年大量工作探索NPs环境转化过程,但"转化(老化)"NPs毒效应研究仍极有限,更遑论毒性机制。
作为非持久性NPs典型代表,ZnO NPs反应性极高,释放入环境或被动物摄入后理化性质和发生态易转化,显著影响毒理学效应。如研究显示ZnO NPs硫化过程改变电荷、疏水性和聚集状态,导致硫化态NPs在人唾液、汗液和支气管肺泡灌洗液中吸附。ZnO NPs吸附蛋白形成特殊蛋白冠通常影响生物效应。生理溶液中磷酸盐可在5-10小时内将ZnO NPs转化为亚稳态ZnHPO₄和Zn₃(PO₄)₂。体外暴露系统中人T淋巴细胞(37°C,含10% FBS的RPMI1640培养基,24小时)中ZnO NPs(≤3 μg/mL)完全转化过程经同步辐射X射线吸收近边结构谱(XANES)研究。上述研究提示仅评估原始(新鲜)ZnO NPs生物效应会低估其环境和健康风险。鉴于此,迫切需要全面理解NPs老化和环境转化过程。
前期研究显示ZnO NPs在超纯水中老化40-120天发生理化转化,转化为Zn₅(CO₃)₂(OH)₆、Zn(OH)₂和Zn²⁺。有趣的是老化ZnO NPs细胞毒性低于新鲜NPs,但毒性变异机制不清。本研究旨在探究新鲜与老化ZnO NPs细胞毒性差异的潜在原因。系统应用两种粒径(20 nm和90-200 nm)ZnO NPs。细胞毒性实验显示老化ZnO NPs诱导形态异常较轻、细胞活率相对较高。RNA测序显示新鲜ZnO NP处理细胞凋亡基因富集,老化ZnO NP处理则较少影响。此外老化ZnO NP暴露细胞裂解半胱天冬酶-3蛋白水平降低,进一步表明新鲜ZnO NPs诱导培养细胞凋亡能力更强。结合前期发现,本研究提示老化ZnO NPs细胞毒性降低归因于其触发细胞凋亡能力减弱。
材料与方法
纳米颗粒与试剂
商业化ZnO纳米粉末(ZnO NPs),制造商标称平均粒径20 nm(纯度99.5%,近球形)和90-200 nm(纯度99.9%,不规则形貌),购自Nanostructured & Amorphous Materials(美国休斯顿)。除特别注明,本研究所有试剂化学品购自Sigma-Aldrich(上海,中国)。
纳米颗粒分散、老化与表征
ZnO NPs储备悬液(1 mg/mL)以干燥纳米粉末悬于Milli-Q H₂O(Millipore, 18 MΩ·cm)制备,高压灭菌(120°C, 30 min)后25°C自然老化0-60天。0天和60天自然转化ZnO NPs分别指定为新鲜和老化NPs。表征或细胞孵育前,新鲜和老化悬液经超声(100 W)30分钟分散。透射电镜(TEM, JEOL JEM-2010, 日本东京)表征新鲜老化ZnO NPs形貌、粒径和聚集。X射线衍射(XRD, PANalytical B.V., 上海,中国)对比标准品确定晶体结构。自然老化过程及表征详见前文。
细胞培养与ZnO NPs处理
AL细胞系为人-仓鼠杂交细胞,由中国仓鼠卵巢(CHO)gly2A突变株与人成纤维细胞融合而成。含标准CHO-K1染色体组和单拷贝人11号染色体,于含胎牛血清(8%)、庆大霉素(25 g/mL)、甘氨酸(2×10⁻⁴ M)的Ham's F12培养基(Hyclone, 美国)中培养(37°C, 5% CO₂,湿饱和)。新鲜老化ZnO NPs储备液超声30分钟分散防团聚,用培养基稀释至适当浓度处理细胞。仅培养基培养细胞作各实验对照。
细胞毒性检测
AL细胞对数生长期接种于35 mm培养皿玻片上(6×10⁴ cells/皿)24小时,随后用含1、5、10、12、15、20 µg/mL新鲜或老化ZnO NPs的2 mL培养基处理72小时。处理结束后用Leica DM4B显微镜(Leica, 德国)获取细胞形态图像。ZnCl₂作为锌离子参考对比ZnO NPs细胞毒性。
细胞计数试剂盒(CCK-8)(APExBIO, 上海,中国)检测细胞活率。详述:AL细胞接种96孔板(4×10³ cells/well)培养24小时,用含不同浓度ZnCl₂、新鲜老化ZnO NPs培养基处理24、48、72小时。工作液中每孔加入储备液体积<培养基总体积5%。处理结束吸去培养基,每孔加100 µL CCK-8工作液,按说明书37°C孵育2小时。Spectra Max M2荧光读数仪(Molecular Devices, 英国)450 nm记录吸光度。细胞活率=各浓度NPs孔吸光度/对照细胞吸光度(100%)×100%。
RNA提取、逆转录与定量PCR
AL细胞对数期接种35 mm培养皿(6×10⁴ cells/皿)24小时。换含12 µg/mL ZnCl₂、新鲜老化ZnO NPs培养基2 mL处理72小时。吸去培养基,PBS洗涤3次。各皿加1 mL Trizol试剂(Invitrogen, 美国)按说明提取总RNA。Q5000UV-Vis分光光度计(Quawell, 美国)定量总RNA浓度纯度。TransGene RT-PCR试剂盒(TransGene Biotech, 北京,中国)按方案逆转录获cDNA。Q5000 UV-Vis分光光度计定量cDNA,SYBR-Green荧光染料(TransGene Biotech, 北京)于Roche RT-PCR系统(Applied Biosystems)分析。
内参基因甘油醛-3-磷酸脱氢酶(Gapdh)评价Il-1α、Il-1β、Caspase 3、CD69、Jun、MT1 mRNA表达。结果以目标基因与Gapdh相对表达比表示。引物序列见表1。
RNA测序数据分析
对照组、老化ZnO NP处理组、ZnCl₂处理组AL细胞总RNA经BangFei Bioscience(北京,中国)测序。简述:按TRIZOL方案提取总RNA至异丙醇沉淀,重悬于提取缓冲液测序。R包Deseq2分析原始计数RNA测序数据。R包VennDiagram生成Venn图。显著变化基因用于后续通路富集分析。实验三独立重复。排除rRNA基因、线粒体基因、检测长度<40 bp基因。
RNA测序数据、参考系列GSE97852、GSE60159、GSE39444源自Gene Expression Omnibus。基因集富集分析图由R(3.6.2版)fgsea包生成。1.5倍显著变化且p<0.05凋亡基因进一步分析。R包"ComplexHeatmap"生成基因树热图,平均链接聚类,欧氏距离度量。STRING2.0进行通路富集分析。
Western Blot分析
AL细胞对数期接种60 mm培养皿(1.5×10⁵ cells/皿)24小时。换含12 µg/mL新鲜或老化ZnO NPs培养基4 mL处理24小时。暴露结束吸去培养基,PBS洗涤3次,冰上RIPA裂解液(Beyotime, 中国)裂解收集细胞蛋白。等量蛋白12% SDS-PAGE电泳分离,转印至聚偏二氟乙烯(PVDF)膜(Roche, 瑞士)。5%脱脂奶粉TBST封闭2小时(25°C),按说明书稀释一抗4°C过夜孵育,HRP标记二抗(1:5000, Promega, 美国)25°C孵育2小时。增强化学发光(ECL)(BOSTER, 中国)检测免疫印迹。抗原/裂解半胱天冬酶-3和抗Actin一抗分别购自Cell Signaling Technology和ImmunoWay。
统计学分析
至少三独立实验结果均值编译统计。数据以均值±标准差(SD)表示,单因素方差分析(ANOVA)比较。所有图中p<0.05标*为统计学显著差异。
结果
ZnO NPs表征
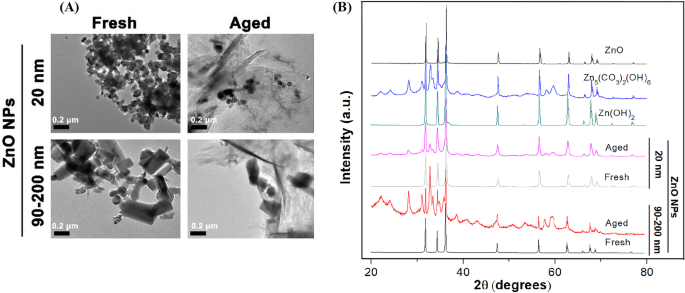
为明确新鲜老化ZnO NPs理化特性差异,先用TEM观察NPs形貌(图1A)。结果显示20 nm新鲜ZnO NPs为近球形结晶,90-200 nm新鲜ZnO NPs为不规则棒状/立方结晶,单颗粒尺寸与制造商提供一致。两种尺寸ZnO NPs在超纯水中均倾向团聚。无论原始NPs形状尺寸,20 nm和90-200 nm ZnO NPs经60天老化后微观结构均从清晰晶体结构剧烈变为非晶或片状/针状。此外,Cu Kα辐射(λ=0.15418 nm)XRD(25°C)测定新鲜老化NPs晶体性质和相纯度(图1B)。新鲜ZnO NPs XRD图谱显示样品由晶体纤锌矿结构组成,无特征杂质峰,提示新鲜NPs高质量。老化NPs XRD图谱显示Zn₅(CO₃)₂(OH)₆(卡片号00-011-0287)和Zn(OH)₂(卡片号00-003-0888)新生固相,表明ZnO NPs(20和90-200 nm)老化过程中发生化学转化。
AL细胞暴露新鲜老化ZnO NPs形态观察
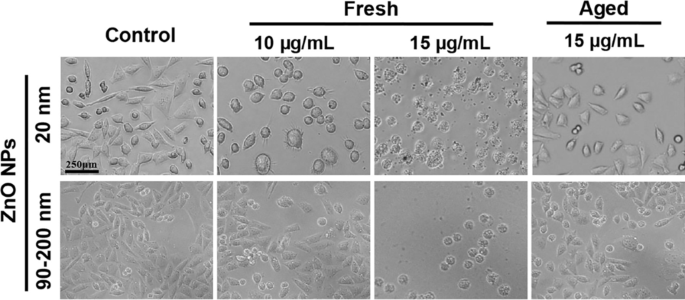
NPs处理导致细胞形状或形态显著变化。AL细胞暴露于10和15 µg/mL新鲜老化ZnO NPs 72小时后立体显微镜观察。图2显示对照组细胞形态正常,2小时内多贴壁,多为梭形或多边形,少数新分裂细胞胞质透明、分散较好。12 μg/mL新鲜ZnO NPs(20 nm & 90-200 nm)处理72小时显著改变细胞形态。虽多数3-5小时内贴壁但铺展不良,部分细胞变圆失去多边形。浓度增至15 μg/mL时细胞萎缩不贴壁,提示活率显著低于10 μg/mL。推测新鲜ZnO NPs 72小时处理LC₁₀₀可能<15 μg/mL。相反,20 nm和90-200 nm老化NP处理组(15 μg/mL)细胞形态无显著影响,大多存活细胞可贴壁铺展,死细胞<半数,揭示老化ZnO NPs细胞毒性远低于新鲜NPs。
老化ZnO NPs诱导细胞毒性低于新鲜NPs
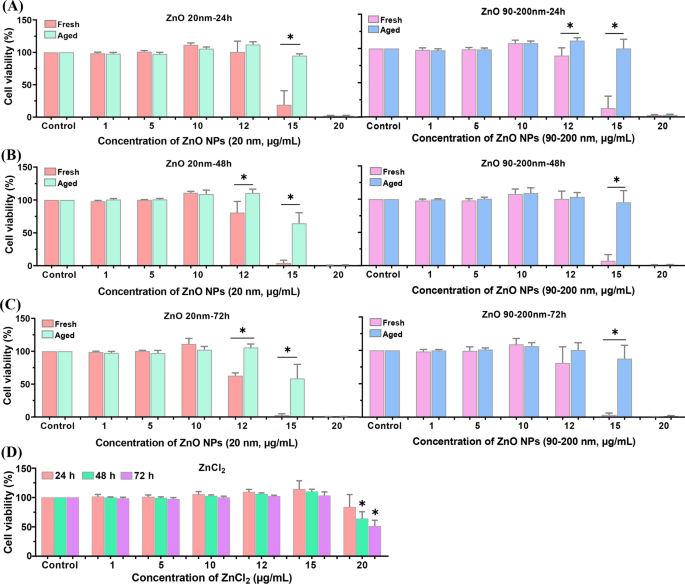
用CCK-8试剂盒进一步探究新鲜老化ZnO NPs细胞毒性差异。图3显示AL细胞梯度剂量(0-20 μg/mL,20 nm和90-200 nm)新鲜老化ZnO NPs孵育24、48、72小时细胞活率呈剂量依赖性下降。≤10 μg/mL ZnO NPs处理无明显细胞毒性。剂量升至12、15 μg/mL时细胞活率呈时间依赖性下降。老化NP处理组细胞活率显著高于新鲜NP组。此外ZnCl₂处理同样剂量和时间依赖性降低细胞活率,但细胞毒性远低于新鲜老化ZnO NPs。
新鲜ZnO NPs处理激活凋亡通路并上调凋亡基因表达
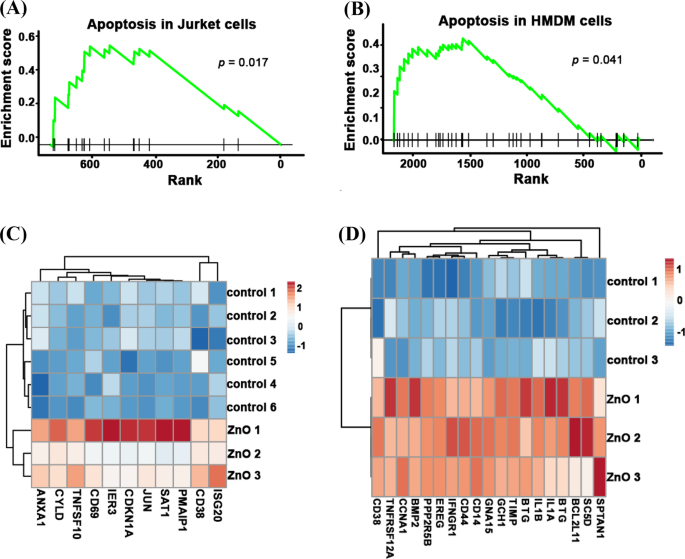
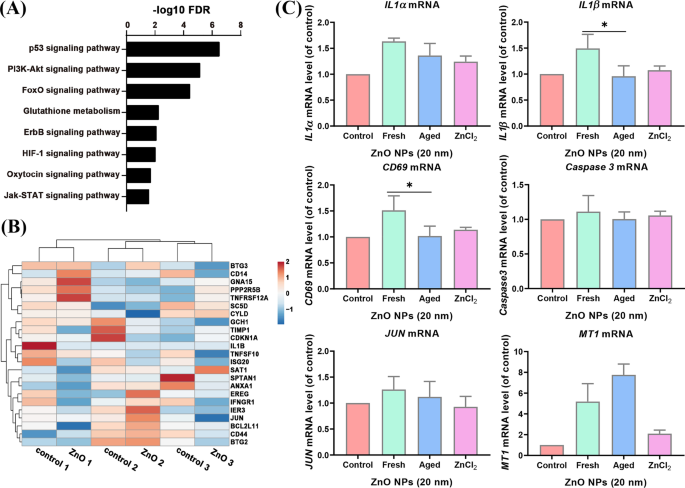
为揭示老化NPs低细胞毒性机制,分析新鲜老化ZnO NPs RNA测序数据。图4A、B显示新鲜ZnO NPs处理后Jurkat细胞(p=0.017)和HMDM细胞(p=0.041)激活凋亡通路。新鲜ZnO NP处理Jurkat细胞凋亡基因ANXA1、CYLD、TNFSF10、IER3、CDKN1A、JUN、SAT1、PMAIP1、CD38、ISG20显著富集。新鲜ZnO NP处理HMDM细胞凋亡基因CD38、TNFRSF12A、CCNA1、BMP2、PPP2R5B、EREG、IFNGR1、CD44、CD14、GNA15、GCH1、TIMP1、BTG2、IL1B、IL1A、BTG3、BCL2L11、SC5D、SPTAN1显著富集(图4C、D)。因Jurkat细胞(外周血T淋巴细胞)和HMDM细胞(人单核细胞源巨噬细胞)细胞类型不同,触发凋亡方式可能不同。总之新鲜ZnO NPs暴露可激活多种细胞不同凋亡通路。
老化ZnO NPs未像新鲜NPs那样上调凋亡基因表达
老化ZnO NP处理AL细胞RNA测序数据显示p53、PI3k-Akt、FoXO、谷胱甘肽、ErbB、HIF-1、催产素和Jak-STAT信号通路富集(图5A)。Jurkat和HMDM细胞富集凋亡基因在老化ZnO NP处理细胞中无显著影响(图5B)。为进一步确证,实时PCR检测相关基因表达。发现部分凋亡基因BMP2、PMAIP1、IL1α、CD69、CCNA1、CD38、IL1β老化ZnO NPs处理AL细胞中不可检测(数据未示),可能因多在免疫细胞表达。新鲜ZnO NP处理组上调凋亡基因(IL1α、IL1β、CD59)经老化ZnO NPs处理表达水平无显著变化。而作为阳性对照的MT1表达显著增加,Caspase 3表达无显著变化(图5C)。数据提示老化ZnO NPs不像新鲜NPs那样在AL细胞中激活凋亡通路基因。
新鲜而非老化ZnO NPs增加活化半胱天冬酶3蛋白表达水平
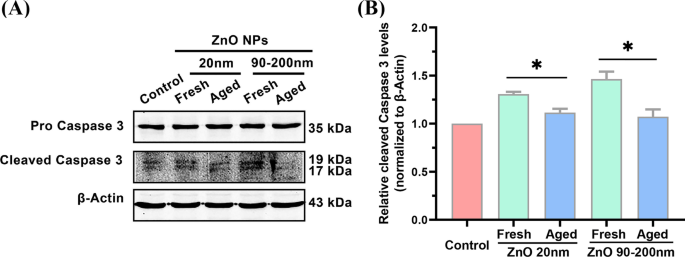
Caspase 3基因表达检测不能直接指示凋亡通路激活。为进一步分析ZnO NPs处理是否改变凋亡蛋白水平,Western blot检测裂解半胱天冬酶3蛋白(常用指示细胞凋亡激活生物标志物)表达。图6显示与对照组相比,新鲜ZnO NPs(20 nm)处理使细胞裂解半胱天冬酶3蛋白水平增加1.31±0.023倍,显著高于老化20 nm ZnO NPs组(1.12±0.039倍)。新鲜ZnO NPs粒径增至90-200 nm时诱导裂解半胱天冬酶3蛋白表达增加1.46±0.078倍,显著大于老化NPs(1.07±0.075倍)。数据进一步阐明新鲜ZnO NPs诱导细胞凋亡效力高于老化NPs。
讨论
报道ZnO NPs自然老化过程经理化转化生成Zn₅(CO₃)₂(OH)₆并释放Zn²⁺。但老化ZnO NPs诱导细胞毒性及机制仍不清。为揭示新鲜老化ZnO NPs细胞毒性差异机制,进行RNA测序分析和RT-PCR测试,Western blot检测细胞凋亡关键执行者Caspase 3蛋白水平。
数据显示老化ZnO NPs在AL细胞中诱导细胞毒性远低于新鲜ZnO NPs。本研究新鲜ZnO NPs(90-200 nm和20 nm)LC₁₀₀<15 μg/mL(图3),与前文ZnO NPs(19-36 nm)对NIH-3T3或MSTO细胞LC₁₀₀约15 μg/mL一致。证实NPs理化性质环境转化可剧烈改变毒性。报道ZnO NPs硫化改变电荷、疏水性、聚集状态,导致硫化态NPs在人唾液、汗液、支气管肺泡灌洗液吸附;ZnO NPs吸附蛋白形成特殊蛋白冠影响生物效应。生理溶液(如唾液)磷酸盐约5-10小时将ZnO NPs转化为亚稳态ZnHPO₄和Zn₃(PO₄)₂并对消化道上皮细胞显示细胞毒性。Ivask等证实体外暴露系统人T淋巴细胞(37°C,含10% FBS RPMI1640,24小时)中ZnO NPs(≤3 μg/mL)完全转化,转化产物光谱和细胞毒性与ZnSO₄一致。本结果显示ZnCl₂对AL细胞剂量和时间依赖性毒性,但细胞毒性远低于新鲜老化ZnO NPs(图3)。进一步解释新鲜ZnO NP细胞毒性不完全归因于释放Zn²⁺。
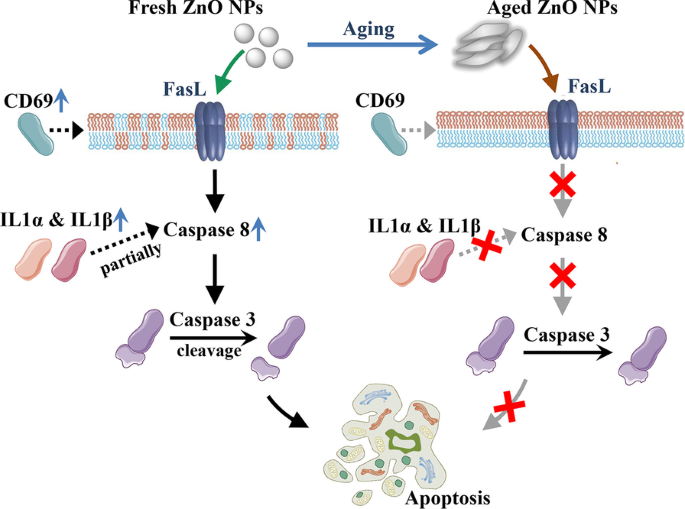
前期研究也显示老化ZnO NPs诱导ROS(活性氧)效力较高,但杀伤细胞能力减弱。推测老化ZnO NPs诱导较低细胞毒性更易被哺乳动物细胞耐受。本研究RNA测序数据阐明凋亡基因在新鲜ZnO NP处理细胞上调,老化NP处理组影响小得多。IL1α和IL1β为白细胞介素1细胞因子家族成员。IL1α和IL1β释放部分依赖性激活Caspase 8诱导凋亡。CD69编码钙依赖性凝集素超家族II型跨膜受体成员。CD69表达增加与凋亡标志物annexin V和CD95(Fas)表达增加相关。JUN为AP-1转录因子亚基。JUN活性增加蛋白水解切割α-血影蛋白(白细胞介素1β转化酶ICE底物)和CED-3家族半胱氨酸蛋白酶,进一步导致程序性细胞死亡。这些凋亡基因表达升高揭示新鲜NPs通过多种方式触发凋亡。凋亡基因表达升高后,凋亡过程最终由凋亡蛋白执行(图7)。Caspase 3为多种凋亡场景核心蛋白酶;其裂解激活外源和内源凋亡通路均必需。因此检测裂解caspase 3是识别多种凋亡信号诱导凋亡常用方法。Western blot数据显示,20 nm和90-200 nm ZnO NPs亚致死暴露均未改变所有处理组原半胱天冬酶3水平。相反新鲜NPs处理显著升高裂解半胱天冬酶3,老化NPs对裂解caspase 3水平鲜有(或无)影响(图6)。结合RNA表达分析,结果清晰阐明新鲜ZnO NPs诱导细胞凋亡效力更高。
结论
本研究证实ZnO NPs在超纯水中自然理化转化,探究新鲜老化NPs诱导细胞毒性差异。重点分析老化ZnO NP处理AL细胞RNA测序数据及数据库新鲜NPs数据。比较老化NP处理组特异性富集信号通路(区别于新鲜NP或ZnCl₂处理组)。数据表明老化ZnO NPs低细胞毒性与其诱导凋亡能力减弱密切相关,而NPs激活多通路转录调控促进哺乳动物细胞建立细胞稳态。
纳米材料
- 机器人与自动化:驱动工业4.0未来
- FePO4纳米颗粒:生物相容性载体用于阿霉素递送、RNA稳定化及增强抗癌活性
- 通过双层厚度控制调控Al₂O₃/ZnO纳米层状结构的形貌、光学与导电性能
- 界面层设计优化ZnO薄膜形貌与性能
- 铜纳米颗粒绿色制备及其催化、抗菌、细胞毒性和抗氧化潜能综述
- 简单溶剂热法合成单分散ZnO纳米回形针的制备与表征
- 生物合成铜与氧化锌纳米颗粒经腹腔与静脉注射大鼠的体内毒性评价
- 树胶绿色合成金属氧化物纳米颗粒及其对衣藻的生态毒性影响
- 氧化锌纳米颗粒:抗菌性质、机制与应用
- 室温甘油稳定法从高浓度氯化锌溶液合成ZnO纳米颗粒
- 优化氧化锌/多孔阳极氧化铝复合膜以实现卓越抗生物膜性能
- 废水处理中的纳米材料与纳米技术:1997–2016年文献计量分析洞察