


靶向miR-301抑制食管鳞癌血管生成和肿瘤生长:通过PTEN激活
摘要
目的
食管鳞状细胞癌(ESCC)以早期转移、晚期诊断为特征。MicroRNA-301(miR-301)已知参与多种癌症,但其在ESCC中的作用尚未探明。本研究旨在探讨miR-301在ESCC进展中的作用。
方法
检测ESCC组织和细胞系中miR-301和磷酸酶与张力蛋白同源物(PTEN)表达。筛选细胞后用改变miR-301或PTEN的寡核苷酸和质粒处理,评估ESCC细胞克隆形成能力、细胞活力、迁移、侵袭、细胞周期分布和凋亡。同时评估肿瘤生长和微血管密度(MVD),验证miR-301与PTEN靶向关系。
结果
ESCC组织和细胞中miR-301上调,PTEN下调。选用KYSE30和Eca109细胞进行功能实验。KYSE30细胞中,抑制miR-301或过表达PTEN抑制细胞恶性行为,沉默PTEN消除了miR-301抑制对ESCC进展的影响。Eca109细胞中,miR-301过表达或PTEN抑制促进细胞恶性行为,PTEN过表达逆转了miR-301上调对ESCC进展的影响。体内实验显示miR-301抑制或PTEN过表达抑制ESCC肿瘤生长和MVD,miR-301上调或PTEN降低作用相反。此外,PTEN被miR-301靶向。
结论
综上,本研究结果揭示miR-301通过调控PTEN表达影响ESCC细胞生长、转移和血管生成。
引言
食管癌(EC)是全球第8大常见癌症,是高死亡率、预后差的关键恶性肿瘤。占EC总病例约90%,食管鳞状细胞癌(ESCC)是中国主要EC类型。低社会经济地位、吸烟、饮酒、营养摄入差、亚硝胺丰富或霉菌毒素污染食物等多因素导致ESCC发生。尽管临床预后和治疗有所改善,ESCC患者预后仍差,5年生存率仅15-25%。因此确定可作为ESCC发展生物标志物的致癌基因或抑癌基因,为ESCC患者提供更有效治疗方法至关重要。
MicroRNAs(miRNAs)是调控基因表达的关键小非编码RNA,通过调节mRNA稳定性和翻译能力影响肿瘤进展。已发现多种miRNAs如miR-4324、miR-889-3p、miR-9与ESCC过程相关。miR-301是位于人类基因组17q22-23 fam33a转录单元形成的miRNAs成员。miR-301过表达已被确认,反映其参与人类疾病。但miR-301在ESCC中的功能机制尚未揭示。此外,PTEN在肿瘤中频繁失活,癌症患者生殖系突变靶向PTEN,发挥抑瘤作用。PTEN失调与ESCC发展相关已获验证。有趣的是,近期研究发现miR-301在非小细胞肺癌中靶向PTEN。但miR-301与PTEN在ESCC发展中的靶向关系尚待揭示。本研究聚焦miR-301和PTEN对ESCC进展影响,属未知且新颖领域。我们推断miR-301可能通过调节PTEN表达影响ESCC血管生成和细胞生长。
材料与方法
伦理声明
研究前获得所有患者书面知情同意。研究方案经吉林大学第二医院伦理委员会批准,遵循赫尔辛基宣言医学研究伦理原则。动物实验严格遵循美国国立卫生研究院实验动物管理使用指南,方案经吉林大学第二医院动物实验伦理委员会批准。
研究对象
2015年1月至2017年12月在吉林大学第二医院胸外科接受食管切除术的110例ESCC患者(78男32女)提供ESCC组织和邻近正常组织(>5 cm远离肿瘤)。其中84例>60岁,26例≤60岁;肿瘤大小:65例≥5 cm,45例<5 cm;71例无淋巴结转移(LNM),39例有LNM;TNM分期:60例I+II期,50例III期;肿瘤位置:13例上段ESCC,97例中下段ESCC。患者均确诊ESCC,术前未接受放化疗。肿瘤完整切除,病理确认切缘阴性。按2009年国际抗癌联盟(UICC)ESCC分期标准,术后病理分期为pT1-4N1-2(I-IIIb)期。术后无显著并发症,排除围手术期死亡病例。
逆转录定量聚合酶链反应(RT-qPCR)
组织和细胞总RNA用Trizol试剂盒(Invitrogen,美国)提取。测定RNA浓度和质量。RNA引物(表1)由TaKaRa生物工程有限公司(辽宁中国)设计合成。按Takara PrimeScript RT reagent Kit with gDNA Eraser(Takara)说明书将RNA逆转录为cDNA。用Light Cycler 480II(Roche)配合Power PCR SYBR green PCR master mix(Takara)进行qPCR。U6作为miR-301内参,β-actin作为PTEN内参。数据用2−ΔΔCt法分析。
Western Blot分析
用RIPA裂解液(Beyotime生物技术研究所,上海中国)提取细胞组织总蛋白,BCA蛋白定量试剂盒(Beyotime)定量。测定各样品蛋白浓度,进行10% SDS-PAGE电泳。转移至硝酸纤维素膜,4°C用5%脱脂奶粉封闭过夜。加入PTEN和β-actin一抗(均1:500,Santa Cruz Biotechnology,美国)过夜孵育,再加相应二抗孵育1小时。增强化学发光试剂(Pierce Chemical,美国)孵育1分钟,暗箱曝光,用LAS4000 mini化学发光成像仪显影。以β-actin为对照用成像系统软件评估灰度值,得最终相对蛋白表达量。用ImageJ2x软件分析蛋白条带。
双荧光素酶报告基因分析
生物信息学软件预测PTEN 3'-非翻译区(UTR)序列与miR-301相互作用,或合成预测靶位点突变序列插入pGL3控制荧光素酶报告载体(Promega,美国)XbaI和FseI位点,构建pGL3-PTEN-wt和pGL3-PTEN-mut载体。正确鉴定wt和mut荧光素酶报告质粒分别与miR-301 mimic和mimic NC共转染KYSE30和Eca109细胞48小时。随后裂解细胞,用荧光素酶检测试剂盒(Promega)分别测定荧光素酶活性。
细胞培养、分组与转染
ESCC细胞系(KYSE-150、KYSE-30、Eca109、KYSE-70)购自中国科学院上海生物化学与细胞生物学研究所,人食管上皮细胞(HEECs)购自明州生物技术有限公司(浙江中国)。细胞在含10%胎牛血清(FBS,Life Technologies,美国)、100 U/mL青霉素G钠盐(Sigma)、100 μg/mL链霉素硫酸盐(Sigma)的RPMI 1640培养基(Invitrogen)中培养。RT-qPCR测定各细胞系miR-301表达和PTEN mRNA表达,选相对表达最高和最低细胞系进行后续细胞实验。
KYSE-30细胞分7组分别处理:miR-301 inhibitor、inhibitor NC、pcDNA-PTEN(oe-PTEN)、pcDNA-NC(oe-NC)、miR-301 inhibitor + si-PTEN、miR-301 inhibitor + si-NC。Eca109细胞分7组分别处理:miR-301 mimic、mimic NC、si-PTEN、si-NC、miR-301 mimic + oe-PTEN、miR-301 mimic + oe-NC。inhibitor NC、miR-301 inhibitor、miR-301 mimic、mimic NC、si-NC、si-PTEN购自GenePharma(上海中国);pcDNA-PTEN NC和pcDNA-PTEN购自上海桑根生物工程有限公司。细胞汇合度达60%时用Lipofectamine 2000(Invitrogen)瞬时转染ESCC细胞。
细胞计数试剂盒(CCK-8)实验
细胞接种96孔板(1×10³细胞/孔)不同时间培养。培养24、48、72、96小时后每孔加10 μL CCK-8溶液(5 mg/mL),37°C避光孵育2小时。用酶标仪(Bio-Rad,美国)测定450 nm光密度(OD)值。
克隆形成实验
转染后细胞以500细胞/孔接种6孔板培养14天。甲醇固定,0.5%结晶紫染色,倒置显微镜下计数克隆数。
Transwell实验
细胞(5×10³)经RPMI 1640培养基孵育后接种Transwell装置上室(Corning,美国),膜未包被或包被Matrigel。24小时后移除上室细胞,下室残留细胞固定用0.1%结晶紫染色。显微镜(Olympus,日本)随机选3视野计数计算细胞数。
流式细胞术
细胞周期和凋亡用流式细胞术评估。Annexin V-FITC(10 μL)和碘化丙啶(PI;5 μL,Sigma)与细胞(5×10⁵细胞/孔)暗室4°C孵育30分钟。用流式细胞仪(BD Biosciences,美国)配合FlowJo v10软件计算凋亡细胞百分比。
细胞周期检测:细胞(5×10⁵细胞/孔)75%乙醇4°C固定过夜,5 μL PI/核糖核酸酶A(Sigma)4°C暗室染色30分钟。用流式细胞仪(BD Biosciences)分析,用ModFit LT v3.2软件(Verity Software House,美国)收集计算各样本14,000荧光信号。
裸鼠皮下成瘤实验
获42只4周龄、16-24 g雌性BALB/c-nu裸鼠(吉林大学实验动物中心)。分14组(n=3)。7组分别注射按细胞分组处理的KYSE-30细胞,其余7组注射Eca109细胞。转染KYSE-30和Eca109细胞浓度调整为5×106细胞/100 μL。无菌条件下固定裸鼠皮下注射相应ESCC细胞。每周测量肿瘤最大长径(L)和短径(W),肿瘤体积(V)=1/2×L×W2。第5周处死裸鼠取出肿瘤称重拍照。成瘤率=有皮下肿瘤小鼠数/注射小鼠总数×100%。以注射时间为横坐标,肿瘤大小为纵坐标绘制生长曲线。
免疫组化染色
裸鼠肿瘤组织10%甲醛固定,石蜡包埋切4 μm切片。60°C烘干2小时,二甲苯脱蜡,梯度乙醇脱水,50 μL 3% H2O2孵育10分钟。0.01 M柠檬酸缓冲液浸泡,95°C水煮抗原修复20分钟,37°C正常山羊血清封闭10分钟,4°C过夜孵育CD34(1:100,Santa Cruz)。加入HRP标记山羊抗兔/鼠IgG聚合物(ZSGB-Bio,北京中国),苏木精复染,脱水透明,中性树脂封片。PBS替代一抗作为阴性对照。微血管密度(MVD)测定:低倍显微镜下观察。染成褐黄色、与周围肿瘤细胞和结缔组织明显区分的内皮细胞或内皮细胞簇视为微血管。断裂分支结构也计为血管,排除管腔>8红细胞、有肌层或较厚管腔血管。记录3个高倍视野微血管数,取平均值为每例MVD。
统计分析
所有统计分析用SPSS 21.0(IBM,美国)进行,GraphPad Prism 6.0制图。数据以均值±标准差表示。两独立组差异用Student's t检验。三组以上比较用单因素ANOVA。P<0.05为统计学显著差异。
结果
ESCC组织和细胞中miR-301高表达,PTEN低表达
用RT-qPCR和Western blot检测ESCC组织和邻近正常组织中miR-301和PTEN表达揭示其在ESCC中作用,发现(图1a-c)ESCC组织中miR-301上调,PTEN下调。按miR-301或PTEN表达中位数分高低表达组,分析miR-301/PTEN表达与ESCC患者临床病理特征相关性。结果显示miR-301/PTEN表达与年龄、性别、肿瘤大小、位置、分化无关,但与ESCC患者TNM分期和LNM相关(表2)。
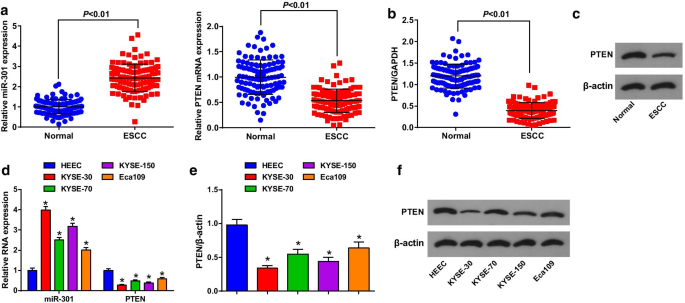
接着用RT-qPCR和Western blot测定4系ESCC细胞系和HEECs中miR-301和PTEN表达。发现(图1d-f)ESCC细胞系中miR-301上调、PTEN下调,其中KYSE-30 miR-301表达最高、PTEN表达最低,Eca109趋势相反。因此细胞实验选用KYSE-30细胞下调miR-301/过表达PTEN,Eca109细胞过表达miR-301/沉默PTEN。
PTEN被miR-301靶向
生物信息学软件(https://www.microrna.org/)预测PTEN为miR-301靶基因(图2a)。双荧光素酶报告基因实验进一步证实:共转染PTEN-wt载体和miR-301 mimic的ESCC细胞荧光素酶活性显著低于共转染PTEN-mut载体和miR-301 mimic者,提示miR-301特异性结合PTEN(图2b、c)。
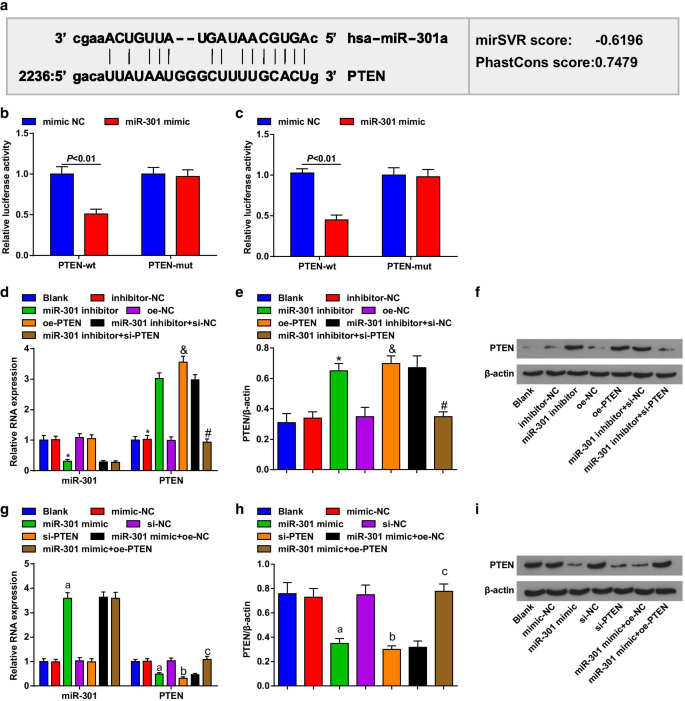
用RT-qPCR和Western blot评估转染细胞miR-301和PTEN表达,发现KYSE-30细胞(图2d-f)中,miR-301 inhibitor处理下调miR-301、上调PTEN;pcDNA-PTEN(oe-PTEN)升高PTEN表达,si-PTEN逆转miR-301 inhibitor对PTEN表达影响。Eca109细胞(图2g-i)中,miR-301 mimic上调miR-301、下调PTEN;si-PTEN降低PTEN表达,pcDNA-PTEN(oe-PTEN)逆转miR-301 mimic对PTEN表达抑制作用。这些数据提示miR-301靶向PTEN。
抑制miR-301或过表达PTEN抑制ESCC细胞活力;上调miR-301或降低PTEN促进ESCC细胞活力
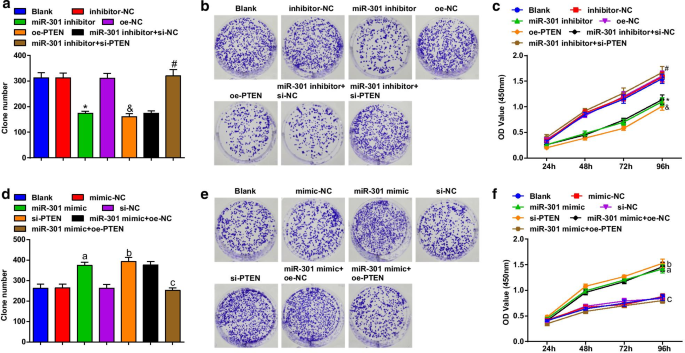
用克隆形成和CCK-8实验评估ESCC细胞活力。结果显示KYSE-30细胞系(图3a-c)中,转染miR-301 inhibitor或oe-PTEN抑制克隆形成能力和细胞活力;沉默PTEN消除miR-301 inhibitor对ESCC细胞活力影响。Eca109细胞系(图3d-f)中,转染miR-301 mimic或si-PTEN促进克隆形成能力和细胞活力;PTEN过表达逆转miR-301上调对Eca109细胞克隆形成能力和活力促进作用。结果提示miR-301敲低或PTEN过表达抑制ESCC细胞活力,miR-301上调或PTEN抑制促进活力。
抑制miR-301或过表达PTEN抑制ESCC细胞迁移侵袭;上调miR-301或降低PTEN促进迁移侵袭
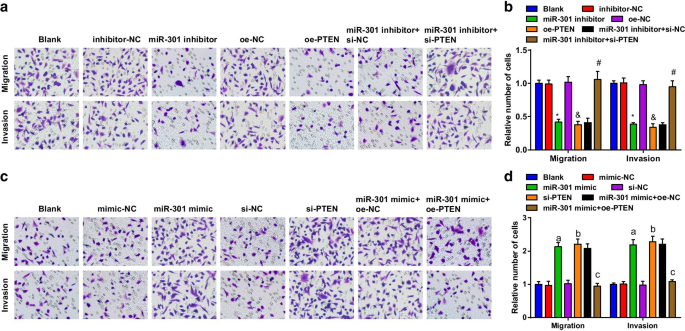
用Transwell实验评估迁移侵袭能力。结果提示KYSE-30细胞系(图4a、b)中,抑制miR-301或过表达PTEN抑制迁移侵袭能力;si-PTEN逆转miR-301 inhibitor抑制作用。Eca109细胞系(图4c、d)中,转染miR-301 mimic或si-PTEN促进迁移侵袭;过表达PTEN逆转miR-301 mimic影响。上述发现暗示ESCC细胞迁移侵袭受miR-301抑制或PTEN升高抑制,受miR-301上调或PTEN下调促进。
抑制miR-301或过表达PTEN诱导ESCC细胞周期阻滞和凋亡;上调miR-301或降低PTEN抑制周期阻滞和凋亡
流式细胞术检测转染后细胞周期转换和凋亡。结果显示KYSE-30细胞系(图5a-d)中,转染miR-301 inhibitor或oe-PTEN促进凋亡率、增加G0/G1期细胞、减少S期和G2/M期细胞;miR-301 inhibitor诱导的凋亡和周期阻滞可被si-PTEN逆转。
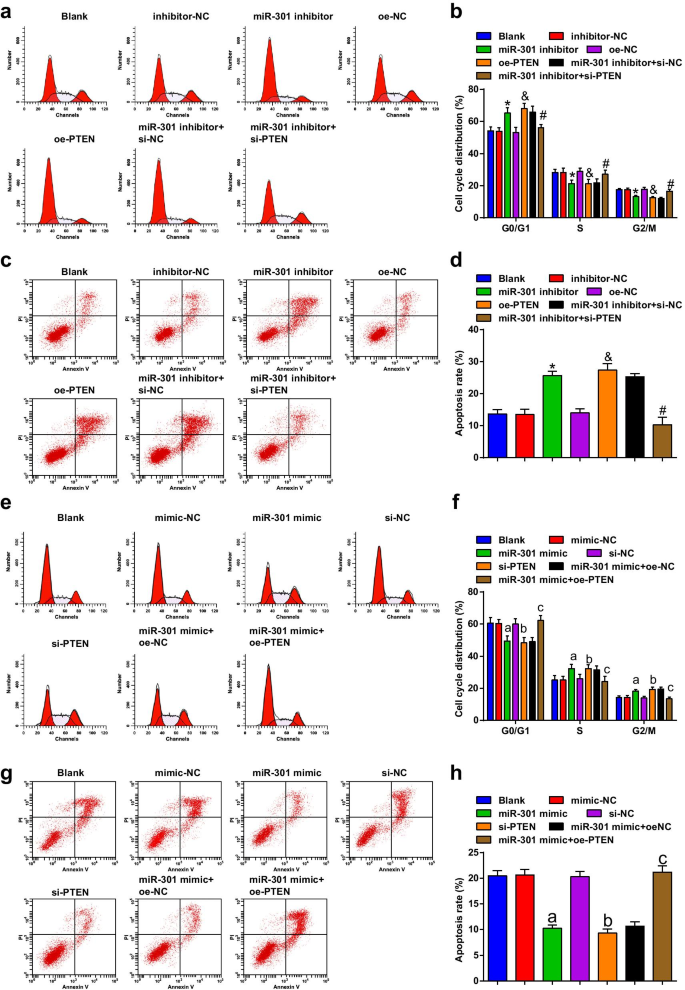
流式细胞术结果显示Eca109细胞系(图5e-h)中,转染miR-301 mimic或si-PTEN抑制凋亡率、减少G0/G1期细胞、增加S期和G2/M期细胞;PTEN过表达逆转miR-301 mimic对Eca109凋亡率和周期阻滞影响。结论:下调miR-301或上调PTEN促进ESCC细胞周期转换和凋亡,上调miR-301或沉默PTEN作用相反。
体内实验:抑制miR-301或过表达PTEN抑制ESCC肿瘤生长和血管生成;上调miR-301或降低PTEN促进肿瘤生长和血管生成
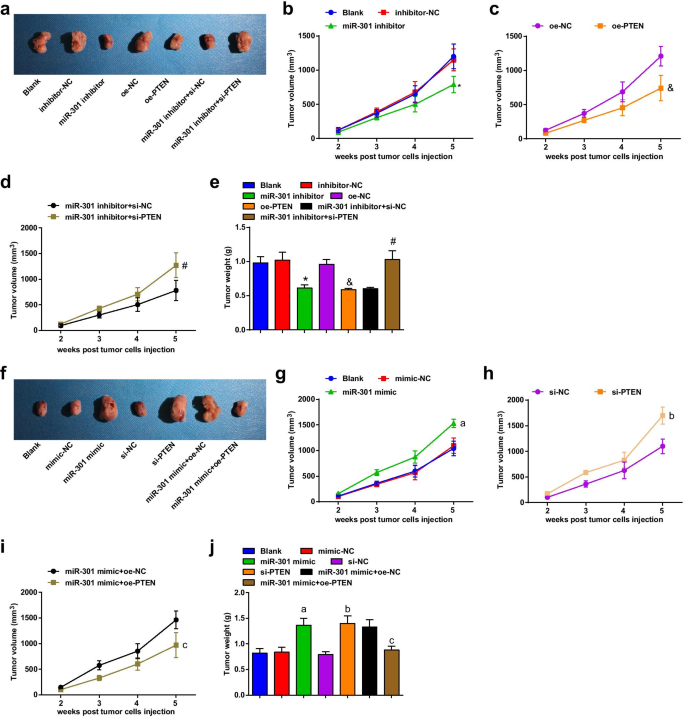
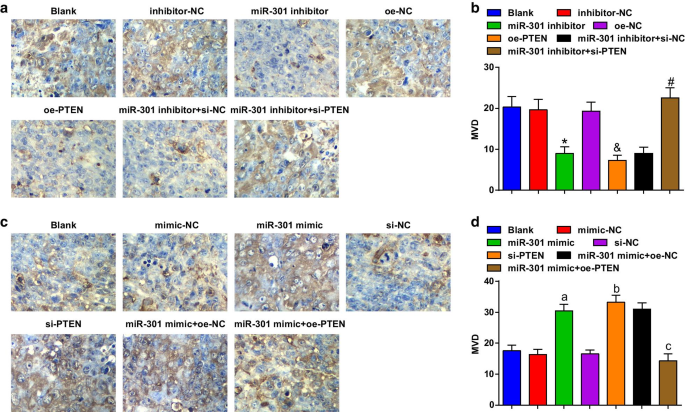
观察各组裸鼠ESCC肿瘤生长变化。肿瘤生长评估结果暗示KYSE-30细胞系(图6a-e)中,注射miR-301 inhibitor或oe-PTEN细胞裸鼠肿瘤体积和重量减小;si-PTEN消除miR-301 inhibitor抑制肿瘤生长作用。Eca109细胞系(图6f-j)中,注射miR-301 mimic或si-PTEN细胞裸鼠肿瘤体积和重量增加;PTEN过表达逆转miR-301 mimic促进肿瘤生长作用。同时用免疫组化染色评估裸鼠异种移植瘤CD34表达,发现(图7a-d)KYSE-30移植瘤中,miR-301下调或PTEN上调抑制MVD;si-PTEN逆转miR-301抑制对MVD影响。Eca109移植瘤中,miR-301上调或PTEN下调增加MVD;PTEN过表达消除miR-301上调诱导MVD增强。数据表明miR-301抑制或PTEN过表达抑制ESCC肿瘤生长和血管生成,miR-301上调或PTEN沉默作用相反。
讨论
EC是消化道侵袭性恶性肿瘤。作为EC主要类型,ESCC发生于食管上皮细胞。miRNAs作为小非编码RNA,已证实在RNA沉默中作为重要引导分子发挥重要作用。本研究旨在探讨miR-301及其靶基因PTEN对ESCC进展影响,发现抑制miR-301可通过上调PTEN抑制ESCC血管生成和细胞生长。
评估miR-301表达发现:ESCC细胞中miR-301高表达于HEEC,ESCC组织中也高表达于邻近正常组织。类似结果,Li等发现miR-301心肌梗死组织高表达。我们阐明PTEN被miR-301靶向,文献已指出此靶向关系。PTEN在ESCC组织和细胞中下调。前人研究发现PTEN在ESCC中较非肿瘤食管上皮组织低表达。Ma等发现PTEN在Eca109细胞系降解,本研究也选Eca109做系列实验。这些研究为ESCC中miR-301高表达、PTEN低表达提供证据。
另一重要结果:抑制miR-301可通过增强PTEN表达抑制ESCC细胞克隆形成和增殖,上调miR-301或降低PTEN作用相反。类似地,Han等阐明木犀草素介导miR-301下调抑制前列腺癌细胞增殖。近期文献显示PTEN过表达抑制胰腺癌细胞增殖,前列腺癌研究也得出相同结论。我们还发现下调miR-301或升高PTEN抑制ESCC细胞迁移侵袭,上调miR-301或降低PTEN呈相反趋势。Shi等支持抑制miR-301减弱乳腺癌细胞迁移侵袭,有报道抑制miR-130b和升高PTEN抑制ESCC细胞迁移侵袭。这些文献验证miR-301致癌角色和PTEN抑瘤作用。另一结果:抑制miR-301过表达PTEN促进ESCC细胞凋亡、诱导G0/G1期周期阻滞,上调miR-301或降低PTEN结果相反。近期文献发现激活PTEN诱导ESCC周期阻滞凋亡。Tian等发现PTEN升高通过降低血管内皮生长因子表达抑制肝细胞癌血管生成。基于上述数据,miR-301和PTEN在多种疾病细胞凋亡和血管生成中作用进一步确认。结论:下调miR-301可通过PTEN高表达抑制ESCC肿瘤生长,乳腺癌和前列腺癌也有类似结论。相反,miR-301上调或PTEN降低诱导ESCC肿瘤生长。可知miR-301和PTEN参与体内癌细胞生长。
结论
本研究表明抑制miR-301通过上调PTEN禁止ESCC细胞血管生成、增殖、迁移侵袭但促进凋亡。研究可促进对ESCC潜在分子机制理解,为ESCC治疗提供新靶点。
缩略语
- ESCC:
- 食管鳞状细胞癌
- PTEN:
- 磷酸酶与张力蛋白同源物
- MVD:
- 微血管密度
- EC:
- 食管癌
- miRNAs:
- MicroRNAs
- LNM:
- 淋巴结转移
- UICC:
- 国际抗癌联盟
- RT-qPCR:
- 逆转录定量聚合酶链反应
- 3′UTR:
- 3'-非翻译区
- WT:
- 野生型
- MUT:
- 突变型
- HRP:
- 辣根过氧化物酶
- FBS:
- 胎牛血清
- OE:
- 过表达
- NC:
- 阴性对照
- CCK-8:
- 细胞计数试剂盒-8
- DMEM:
- Dulbecco改良Eagle培养基
- PI:
- 碘化丙啶
- FITC:
- 异硫氰酸荧光素
- MVD:
- 微血管密度
- ANOVA:
- 方差分析
纳米材料
- 5G时代电信运营商如何应对指数级数据增长挑战
- 靶向miR-342-5p/Wnt3a轴稳定动脉粥样硬化斑块并抑制ApoE−/−小鼠血管生成
- 伊卡里因负载mPEG纳米颗粒:增强对LPS诱导H9c2细胞心肌毒性的保护
- 纳米柱诱导的U2OS细胞肌动蛋白细胞骨架与局灶粘附调控
- 原子层沉积与水热生长制备层级ZnO/聚酰胺-6纳米纤维增强抗菌活性
- 15 nm金纳米颗粒对HT29结肠癌与SPEV胚肾细胞增殖、凋亡及球体形成的影响
- 金纳米颗粒修饰6-巯基嘌呤与狂犬病毒源肽协同促进SH-SY5Y神经细胞增殖与神经突生长
- γ-Fe₂O₃纳米颗粒作为纳米酶促进油菜生长并增强抗旱性
- 金纳米颗粒尺寸与浓度对拟南芥根系发育的影响
- 基于TiO₂-碳纳米纤维的增强型阳极催化剂载体用于直接甲醇燃料电池
- 自催化 MOCVD 生长 InGaAs/InP 核壳纳米线:卓越的光致发光与应变控制生长
- 金纳米颗粒调控人肝细胞癌细胞中 CYP3A4 活性与细胞毒性:粒径、表面化学与蛋白质冠层的影响